
Hi ha un moment, durant una sessió de teràpia manual, que gairebé tots els pacients reconeixen: el fisioterapeuta posa les mans sobre una restricció fascial i es queda quiet. Passen els segons. La pregunta arriba tard o d’hora: què fa, si no es mou? La resposta és llarga, i val la pena donar-la, perquè en aquest silenci hi passen moltes coses.
1. Una xarxa contínua, no un sistema de capes
L’anatomia clàssica ens va ensenyar a veure el cos com un conjunt de peces: músculs que tiren d’ossos, capes que se separen amb el bisturí. Funciona molt bé en una sala de dissecció. Però quan s’observa el teixit viu amb fibroendoscòpia, apareix una altra cosa: una xarxa multimicrovacuolar contínua, de fibres irregulars i fractals, sense plans rígids.
Aquesta xarxa uneix pell, vasos, nervis, múscul i vísceres en una sola continuïtat. Un jersei de llana n’és una bona imatge: si s’estira un fil de l’esquena, la tensió es reparteix per tota la peça.
Biotensegritat: ossos suspesos en una xarxa tensa
El model de biotensegritat descriu aquest comportament. Els elements rígids (els ossos) floten dins d’una xarxa contínua de components tensils (fàscia, lligaments, tendons) que viu sempre en un estat de pretensió.
Quan apliquem una força local, l’estrès no es queda al punt d’impacte. Es reparteix en tres dimensions a través dels microvacuols i de les fibres bifurcades, i el sistema reajusta la geometria global sense trencar la continuïtat del col·lagen.
Una xarxa que reparteix tensions així ha d’estar feta d’un material capaç de «notar» què li passa. Aquest material és el col·lagen.
2. El col·lagen, un material que respon a la pressió
El col·lagen tipus I és aproximadament el 90 % del col·lagen de l’organisme. La seva unitat bàsica, el tropocol·lagen, són tres cadenes polipeptídiques enrotllades en una triple hèlix levogira, amb una glicina cada tres aminoàcids. Aquesta geometria li dona una distribució de càrregues asimètrica, amb pols positius i negatius. I aquí hi ha la clau: una molècula amb pols definits reacciona elèctricament quan es deforma.
Piezoelectricitat: electricitat per pressió
Un material piezoelèctric genera una petita diferència de potencial quan es deforma. En comprimir o traccionar una estructura cristal·lina, se’n trenca la simetria de càrregues. Per això, des de la biofísica, el col·lagen s’ha descrit com un cristall líquid orgànic amb comportament semiconductor.
Hi ha un segon fenomen, que no depèn del col·lagen sinó del líquid que l’envolta. Quan el líquid intersticial, ric en ions, es desplaça sobre les superfícies carregades de la matriu extracel·lular, genera un potencial de flux. El més interessant és que aquesta informació elèctrica podria viatjar lluny del punt on s’ha fet la compressió.
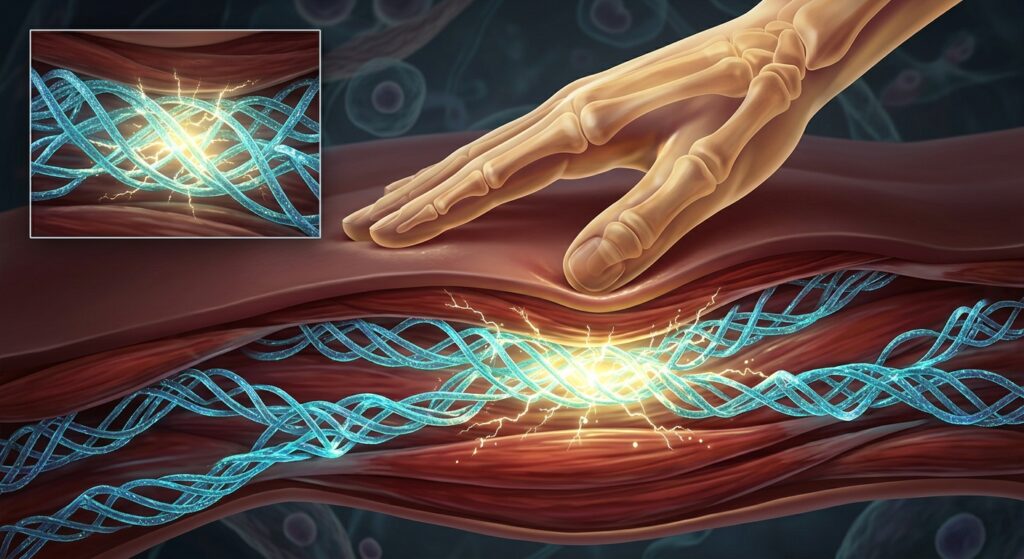
D’altra banda, les beines connectives dels nervis perifèrics (epineuri, perineuri i endoneuri) es continuen amb la fàscia muscular i el periosti. Aquesta xarxa perineural s’ha proposat com a via de conducció elèctrica.
Davant d’un traumatisme, el teixit lesionat emetria una «corrent de lesió» que informaria fibroblasts i macròfags perquè comencin la reconstrucció. Seria com un avís intern que diu «aquí ha passat alguna cosa».
Cal dir-ho clar: és un model biofísic sòlid in vitro, però la seva traducció a la clínica encara és, en part, hipòtesi.
3. De la tensió al gen: com la cèl·lula llegeix la matriu
La cèl·lula no viu aïllada. S’ancora a la matriu extracel·lular a través de les integrines, mecanoreceptors d’adhesió que s’uneixen per fora al col·lagen i a la fibronectina.
Per dins, la cua de la integrina s’acobla a la tal·lina, la vinculina i l’actina. Aquestes proteïnes arriben, a través del citoesquelet, fins a les proteïnes SUN1/SUN2 i la nesprina de l’embolcall nuclear. El resultat és un pont de tensió directe entre l’exterior de la cèl·lula i el seu nucli.
Aquest procés on un senyal mecànic es converteix en una resposta bioquímica i, finalment, genètica, es diu mecanotransducció.
Els experiments de Donald Ingber ho van il·lustrar bé. Quan una cèl·lula pot estendre el seu citoesquelet, és capaç de proliferar i sintetitzar proteïnes. En canvi, quan aquesta cèl·lula s’arrodoneix i es col·lapsa, activa programes d’apoptosi. La forma de la cèl·lula, per tant, condiciona el que fa. La tracció altera la configuració del nucli i activa o silencia gens implicats en la producció de col·lagen, enzims de remodelació i citocines.
Si la cèl·lula depèn tant de l’entorn que li arriba, el que passa en aquest entorn deixa de ser un detall. I l’entorn pot canviar.
4. Quan la matriu es torna rígida: gel, sol i entrecreuaments
L’espai entre cèl·lules i fibres l’ocupa la substància fonamental, una solució col·loidal gelificada rica en proteoglicans i glicosaminoglicans (GAG). N’és protagonista l’àcid hialurònic, la molècula més hidròfila de l’organisme. Actua com un lubricant hidràulic que deixa lliscar les làmines fascials entre si i sobre els ventres musculars. Pel cos circulen uns 15 litres de fluid intersticial a través d’aquests microespais.
Aquesta substància és tixotròpica: canvia de consistència segons com es tracti. Un bon exemple és el ketchup. Quiet a l’ampolla, és espès. Si s’agita, flueix.
- Gel: amb immobilitat, estrès repetitiu o descens del pH, l’àcid hialurònic augmenta la viscositat i la matriu es torna semisòlida.
- Sol: amb estímuls mecànics sostinguts (pressió, cisallament) i un lleuger augment de temperatura local, les unions moleculars dels GAGS s’afebleixen i la substància esdevé més fluida.
Què passa quan el cos no es mou
La immobilitat prolongada, un traumatisme o el procés de cicatrització, poden fer perdre entre un 30 % i un 40 % de l’aigua i dels GAGS. Es redueix la distància lubricant entre fibres veïnes i comencen a fregar-se. Entre fibres madures i fibres acabades de sintetitzar es formen entrecreuaments patològics.
Aquests entrecreuaments, són ponts moleculars anòmals que limiten la flexibilitat. També poden dificultar el drenatge de metabòlits i la conducció bioelèctrica. Així s’obre un cercle viciós d’hipomobilitat i dolor miofascial.
Ara el problema és sobre la taula: una matriu que s’ha espessit i uns fibroblasts que reben senyals pobres. Què hi poden fer les mans?
5. Què fan les mans: temps, esponja i ordre
La pregunta del pacient era per què el fisioterapeuta no es mou. La resposta és que el temps és part de la tècnica.
Per què esperem de tres a cinc minuts
Quan apliquem una força sobre la fàscia, el teixit passa per fases mecàniques ben diferenciades:
- Deformació pre-elàstica: s’absorbeix la laxitud o tensió de repòs.
- Deformació elàstica: canvi de forma reversible, com un ressort.
- Fase viscoelàstica: amb una càrrega constant, el teixit continua deformant-se progressivament.
- Histèresi: part de l’energia es dissipa en forma de calor pel fregament intern dels fluids desplaçats.
Si la força és ràpida o brusca, la fàscia profunda respon endurint-se. Una pressió suau, constant i tridimensional demana, en canvi, un mínim de 90 a 120 segons, i sovint s’allarga de tres a cinc minuts per barrera en maniobres profundes com la de mans creuades.
Aquesta finestra permet superar la resistència pre-elàstica, dissipar l’energia per histèresi i donar temps a la transició tixotròpica de gel a sol. Cal precisar que aquests temps venen de la pràctica clínica i de models biomecànics. No són un llindar demostrat amb una xifra exacta.
L’efecte esponja
Amb el teixit ja fluïdificat, la compressió manual «espremeria» l’espai intersticial densificat i empenyeria l’aigua estancada i els residus metabòlics cap als capil·lars venosos i limfàtics. En alleujar la pressió, el teixit aspira aigua fresca, electròlits i àcid hialurònic acabat de sintetitzar pels fasciòcits. Aquesta rehidratació repolimeritza la matriu i recupera el volum de l’espai intersticial.
6. El sistema nerviós hi té molt a dir
La fàscia és un dels òrgans sensorials més rics del cos, amb una densitat altíssima de terminacions nervioses, on hi destaquen dos receptors:
- Corpuscles de Ruffini: responen a la pressió sostinguda i, sobretot, a les forces tangencials. S’ha vinculat la seva estimulació amb una reducció de l’activitat simpàtica, una disminució del to muscular i vasodilatació.
- Receptors intersticials (tipus III i IV): són la majoria dels mecanoreceptors fascials, i bona part són fibres amielíniques tipus IV. Tenen un llindar molt baix, reaccionen a un tacte suau i participen en la regulació de la pressió arterial, la freqüència cardíaca i la circulació local.
Inflamació a escala cel·lular
En models in vitro (Meltzer, Standley i col·laboradors), l’aplicació d’alliberament miofascial sobre cultius de fibroblasts sotmesos a estrès repetitiu va reduir l’apoptosi i va modular la secreció de citocines, entre elles la interleucina-8 (IL-8). La pressió suau actuaria, doncs, com a moduladora citoquímica de la reparació tissular.
Amb totes les peces damunt la taula, toca preguntar fins a quin punt encaixen.
7. El que sabem i el que encara no
Durant anys s’ha explicat la teràpia manual com si el terapeuta «trenqués» o «estirés» fibres endurides a força de braç. Les dades apunten cap a un altre lloc. Gran part de l’efecte semblaria passar per una combinació de mecanismes neurobiològics, hidrodinàmics i cel·lulars, més que per una deformació permanent del teixit.
La pressió ferma com la suau i sostinguda, aplicada en la direcció de la restricció, podria afavorir la fluïdesa tixotròpica, orientar el col·lagen mitjançant gradients elèctrics i calmar el sistema simpàtic via Ruffini i receptors tipus IV.
Tot i que la recerca empírica sobre el comportament de la fàscia en la teràpia manual encara té moltes preguntes obertes, tot sembla indicar que, quan les mans del fisioterapeuta sostenen una pressió, al teixit del pacient hi succeeixen processos químics, elèctrics i epigenètics.


